

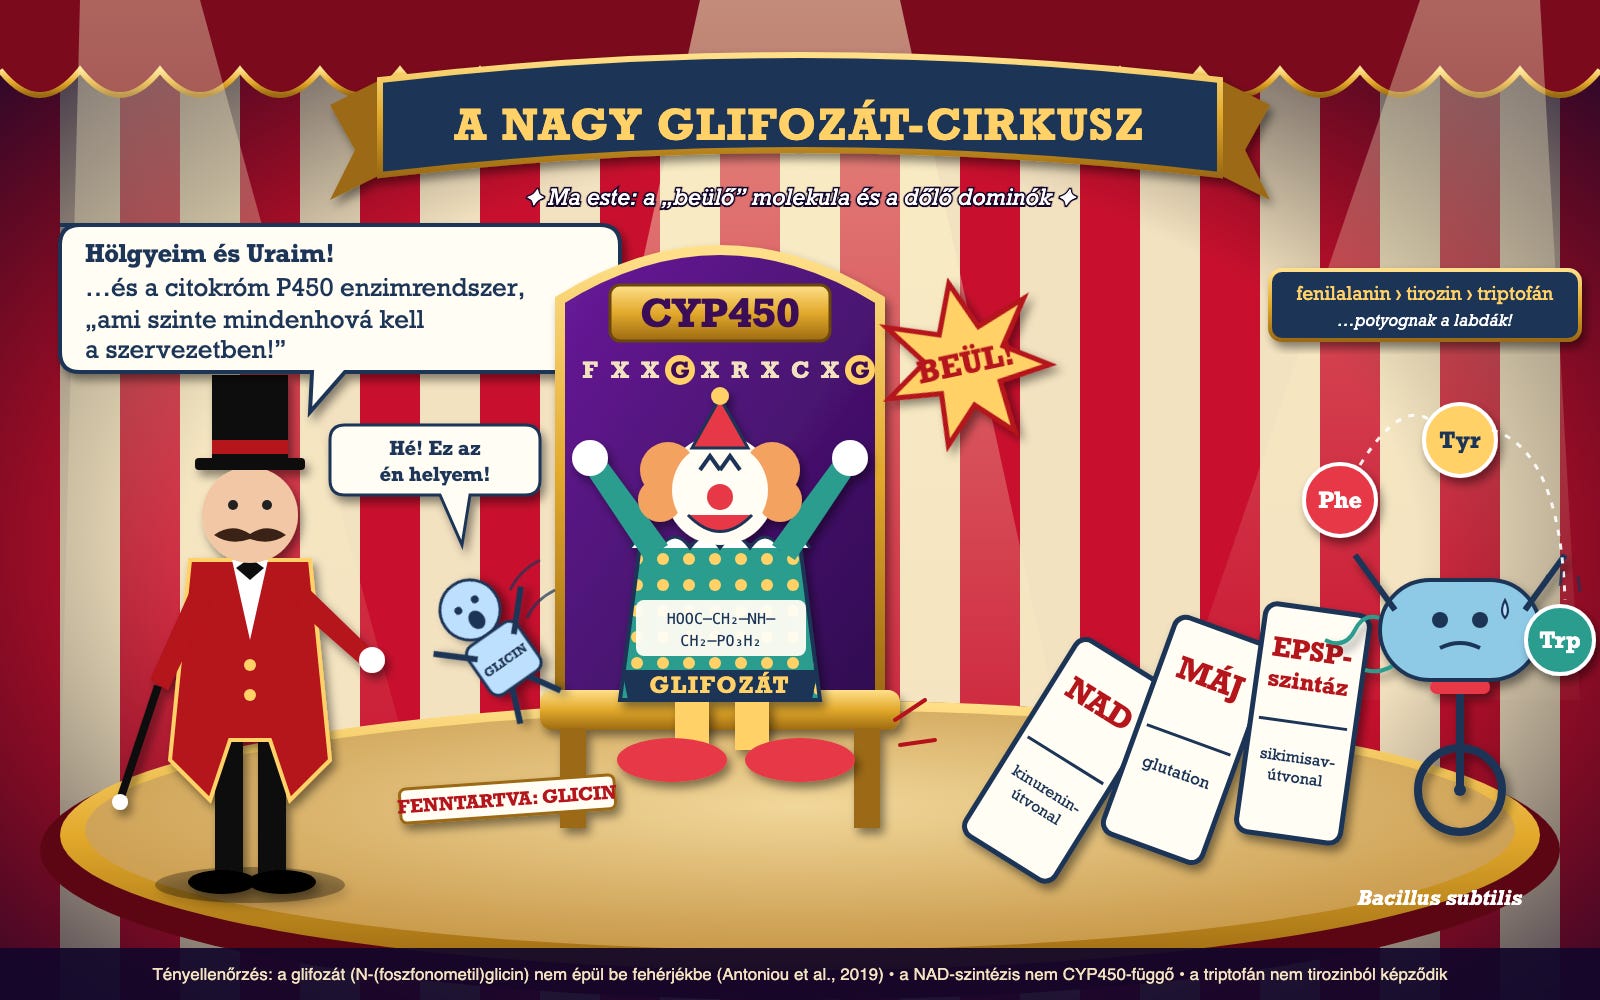
Mester Károly kifogyhatatlan aranybányája az összefüggéstelen szósalátáknak. Szembejött velem egy olyan bejegyzés, amelyet próbálok egyetlen cikkel elemezni a valóságtartalmát illetően.
... és a citokróm p450 enzimrendszert is, ami szinte mindenhová kell a szervezetben! "Beül" a glifozát (glicin-metil-foszfát) a cyp450 glicin helyére és elrontja az enzim működését: pl. kinurenin útvonalon a NAD képződését, máj glutation működését, hasznos baktériumok mint pl. Bacillus Subtilis sikiminsav útvonalában az EPSP szintáz enzim működését, ezáltal a fenilalanin>tirozin>triptofán képződését...!
Impresszív teljesítmény, ennyi idegen szót összezsúfolni néhány sorba és biztosan meg is ragadta a magas műveltségű követőinek a fantáziáját a felvázolt mechanizmus.
Nagy kár, hogy teljesen hamis állítások és következtetések szerepelnek benne.
Lássuk a részleteket Mester Károly kedvenc témáival kapcsolatban.
Ez a lista nem azt jelenti, hogy bármelyik állítása is igazolva volna, mindössze egy kivonatos gyűjteménye az állításainak, amelyet szembesítek a tudomány által is igazolt mechanizmusokkal.
Tényellenőrzés
A glifozát nem ül be a CYP450 enzim glicinjeinek helyére, és nem rontja el ezen keresztül sem a NAD-képződést, sem a máj működését, sem a bélbaktériumok aromásaminosav-termelését. Mester Károly agrármérnök, természetgyógyász több előadásában és interjújában is elmondta ezt a láncolatot. Az alábbiakban lépésenként, szakirodalommal vetjük össze az állításokat a mai tudással.
1. „Glicin-metil-foszfát”? A kémiai név is hibás
A glifozát helyes neve N-(foszfonometil)glicin, képlete HOOC–CH₂–NH–CH₂–PO₃H₂ [1]. Ez foszfonát: a foszfor közvetlenül szénhez kötődik (C–P kötés), nem oxigénen át, mint egy foszfát-észterben. A „glicin-metil-foszfát” más vegyületet jelölne.
A név azért fontos, mert erre épül a „glicin-analóg, tehát glicinként viselkedik” gondolat. A glifozát nitrogénjén egy nagy, kétszeresen negatív foszfonometil-csoport ül. Szerkezete és töltése ezért lényegesen eltér a glicinétől. Az, hogy a molekula glicinvázat tartalmaz, nem jelenti, hogy a sejt glicinnek nézi.
2. „Beül” a glicin helyére? Nem, és ezt kísérletileg is megvizsgálták
Egy fehérje aminosavai a fordítás során, a riboszomán kerülnek a láncba, a génben kódolt sorrendben. Egy kész enzim glicinjei utólag nem cserélhetők ki. Hogy egy idegen molekula a fordításkor bekerüljön, ahhoz a glicil-tRNS-szintetáznak tévesen tRNS-re kellene töltenie. Ez az enzim azonban nagyon pontosan válogatja az aminosavakat.
A „glicin-helyettesítés” Samsel és Seneff 2016-os hipotézise, saját kísérleti adat nélkül [2]. Antoniou és munkatársai 2019-ben ezt közvetlenül tesztelték [3]. Gyorsan osztódó emberi sejteket hat napig 100 mg/l glifozátban tartottak, majd a teljes fehérjekészletet tömegspektrometriával vizsgálták. Glifozátot tartalmazó peptidet nem találtak; a jelöltek mind téves találatnak bizonyultak.
A CYP450-enzimek FXXGXRXCXG motívuma valóban létezik: ez a hem-kötő szakasz. Mester Károly diáján erre Syed és Mashele 2014-es cikkével hivatkozik [4]. Az a cikk azonban gombák P450-motívumait elemzi, és glifozátról nem szól. Ugyanez a mechanizmus cáfolja az izom, a kollagén és a tight junction „glifozátos” fehérjéiről szóló állításokat is.
A „glicinpolc a májban” kép sem áll meg. Szájon át a glifozát kb. 20–30%-a szívódik fel. A felszívódott rész szinte változatlanul ürül a vizelettel és a széklettel, és nem halmozódik fel [5][6]. A legtöbb a csontban és a vesében marad vissza, nem a szívben vagy az izomban [5].
3. CYP450 és NAD: a kinurenin-útvonalon nincs CYP450
A NAD⁺ előállításának egyik lépését sem citokróm P450 enzim végzi. A szervezet három úton készít NAD⁺-t [7][8][9]:
De novo, triptofánból, a kinurenin-útvonalon: TDO/IDO, kinurenin-formamidáz, kinurenin-3-monooxigenáz (KMO), kinurenináz, 3-HAO, majd kinolinsav és QPRT. A KMO flavin-függő monooxigenáz, nem CYP.
Preiss–Handler-út: nikotinsavból a NAPRT, az NMNAT és a NAD-szintetáz segítségével.
Mentőút: nikotinamidból a NAMPT és az NMNAT segítségével.
A diákon szereplő „a nikotinsav amidálását CYP450 végzi” állítás is téves. Az amidcsoportot a NAD-szintetáz (NADSYN1) teszi fel, glutamin felhasználásával, már a nukleotid szintjén [7].
Arra sincs közlemény, hogy a glifozát a kinurenin-útvonal bármely enzimét gátolná. Az inzulinrezisztencia és a PCOS „NAD-hiányos mitokondriális betegségként” való levezetése így két hibás premisszára épül.
A glifozát általános CYP450-gátlásáról is csak sejtkultúrás és nagy dózisú állatkísérleti adatok vannak. Az aromatáz (CYP19A1) gátlását főleg a Roundup-készítménynél mérték, a felületaktív segédanyagok miatt [10]. Ez nagyságrendekkel nagyobb koncentráció volt, mint ami élelmiszerből a szervezetbe jut. Az EFSA endokrin értékelése szerint a glifozát nem hormonmoduláns hatóanyag [11][12].
Mellékes, de jellemző a kukoricás pellagra magyarázata. Nem egy „antivitamin” gátolja a triptofán→niacin átalakulást: a kukorica niacinja kötött, nem felszívódó formában van, és kevés benne a triptofán [13].
4. Máj glutation: a dózis dönt
A glutation (GSH) három aminosavból (glutamát, cisztein, glicin) épül fel, két ATP-függő enzim révén. A folyamatban nincs CYP450, és nincs „glicinhely”, amelyet a glifozát elfoglalhatna. A glifozát lebontása sem glutation-konjugációval történik: a felszívódott rész nagyrészt változatlanul ürül [5][6].
Rágcsálókban, nagyon nagy dózisoknál valóban leírtak oxidatív stresszre utaló jeleket, köztük a máj GSH-szintjének változását. Ezek a dózisok azonban sokszorosan meghaladják az elfogadható napi beviteli értéket (ADI: 0,5 mg/ttkg/nap). Az EFSA 2023-as szakértői értékelése nem talált kritikus májtoxicitást a releváns expozíciónál [12]. Az ilyen nagy dózisú, általános stresszválasz és egy konkrét „enzimbe ülés” két különböző dolog.
5. Bacillus subtilis és az EPSP-szintáz: ami igaz, és ami nem
Ez a láncolat egyetlen valós eleme. A glifozát hatásmechanizmusa az EPSP-szintáz gátlása a sikimisav-útvonalon, növényekben és sok baktériumban. A B. subtilis EPSPS-e természetes körülmények között is erősen gátolható [14]. Ez azonban nem a CYP450-en keresztül történik, és nem is „glicinhelyre üléssel”: a glifozát az enzim aktív helyén a foszfoenolpiruvát (PEP) szubsztrát helyére kötődik.
A belőle levont következtetések viszont nem állnak meg:
A B. subtilis alkalmazkodik. Kevesebb glifozátot vesz fel, mert a GltT-transzporterét lekapcsolja [14][15].
A B. subtilis nem meghatározó béllakó. Talajbaktérium, az emberi bélben főleg spóráként, kis számban és átmenetileg fordul elő [16].
Nem „minden jó bélbaktérium” érzékeny. Az EPSPS-nek érzékeny (I.) és rezisztens (II.) osztálya van. Szekvenciaelemzés szerint a mag-bélmikrobiom fajainak kb. 54%-a lehet potenciálisan érzékeny; ez előrejelzés, nem mért hatás [17][18].
A bélben bőven van aromás aminosav. Patkányban az ADI 50-szereséig is csak minimális volt a hatás a bélflóra összetételére. Ennek oka, hogy a baktériumok a táplálékból származó fenilalanint, tirozint és triptofánt egyszerűen felveszik [19]. Egy másik patkányvizsgálat a vakbélben kimutatta a sikimisav-útvonal gátlásának metabolikus nyomát, de egészségkárosodást nem [20].
Az ember nem a bélbaktériumokból kapja a triptofánt. A triptofán esszenciális aminosav, a táplálékból kell bevinni, napi kb. 4 mg/ttkg mennyiségben [21]. A bélflóra nem ellátja a szervezetet triptofánnal, hanem éppen lebontja (indolok, kinurenin) [22].
B12-vitamint a B. subtilis nem készít. Nincs meg hozzá a teljes bioszintézis-útja [23]. A vastagbélben termelt B12 amúgy sem szívódik fel, mert a felszívódás a csípőbélben, intrinsic faktorral történik [24].
6. „Fenilalanin > tirozin > triptofán”? Az útvonal elágazik
A sikimisav-útvonal nem egyenes lánc, hanem a korizmátnál kettéválik [25][26]:
az egyik ág (antraniláton át) a triptofánhoz vezet;
a másik (prefenáton vagy arogenáton át) a fenilalaninhoz és a tirozinhoz.
Triptofán tehát nem tirozinból készül. Fenilalaninból tirozin az állatok szervezetében képződik, a fenilalanin-hidroxiláz enzimmel. Ehhez nincs szükség sem sikimisav-útvonalra, sem bélbaktériumra.
Ugyanebben az előadásban (Tabuk, titkok, tények, 2024.05.07., 8:31) elhangzik, hogy a pajzsmirigyhormon „két triptofánból” képződik. Ez alapvető tévedés. A T3 és a T4 két jódozott tirozinból képződik, a tireoglobulin fehérjén [27]. Egy másik interjúban Mester Károly maga is tirozint mond, tehát az állításai ellentmondanak egymásnak.
Az ember a szerotonint és a dopamint a táplálékból származó triptofánból, illetve tirozinból állítja elő. Az a következtetés, hogy a bélbaktériumok sikimisav-útvonalának gátlása szerotonin- és dopaminhiányt, pszichés betegséget vagy Parkinson-kórt okozna, nem áll meg. Nincs mechanisztikus vagy epidemiológiai bizonyíték rá.
Konklúzió
Az idézett mondat egy valós tényre épül: a glifozát gátolja a növények és sok baktérium EPSP-szintázát. A többi láncszem azonban hibás. A molekula nem ül be enzimekbe, a NAD-szintézisben nincs CYP450, a triptofán nem tirozinból készül, a pajzsmirigyhormon pedig tirozinból lesz.
A hibák mintázata több előadásban is ugyanaz. Egy hipotézist (Samsel–Seneff) tényként kezel, olyan forrásra hivatkozik, amely nem arról szól (Syed–Mashele), és egyáltalán nem veszi figyelembe a dózist. Az eredmény egy hihetően hangzó, biokémiai szakszavakkal teli, de bizonyítékkal alá nem támasztott oklánc.
Mindenki számára javaslom a forrásellenőrzést bárki állításával kapcsolatban.
A tekintély nem helyettesíti a hiteles tájékoztatást.
Forrásirodalom
Samsel A, Seneff S (2016) Glyphosate pathways to modern diseases V: Amino acid analogue of glycine in diverse proteins. J Biol Phys Chem 16:9–46.
Antoniou MN et al. (2019) Glyphosate does not substitute for glycine in proteins of actively dividing mammalian cells. BMC Res Notes 12:494.
Syed K, Mashele SS (2014) Comprehensive comparative analysis of cytochrome P450 signature motifs EXXR and CXG… PLoS ONE 9(4):e95616.
Brewster DW, Warren J, Hopkins WE (1991) Metabolism of glyphosate in Sprague-Dawley rats. Fundam Appl Toxicol 17:43–51.
Anadón A et al. (2009) Toxicokinetics of glyphosate and its metabolite AMPA in rats. Toxicol Lett 190:91–95.
Bogan KL, Brenner C (2008) Nicotinic acid, nicotinamide, and nicotinamide riboside: NAD⁺ precursor vitamins. Annu Rev Nutr 28:115–130.
Covarrubias AJ et al. (2021) NAD⁺ metabolism and its roles in cellular processes during ageing. Nat Rev Mol Cell Biol 22:119–141.
Badawy AA-B (2017) Kynurenine pathway of tryptophan metabolism. Int J Tryptophan Res 10:1178646917691938.
Richard S et al. (2005) Differential effects of glyphosate and Roundup on human placental cells and aromatase. Environ Health Perspect 113:716–720.
EFSA (2017) Peer review of the potential endocrine disrupting properties of glyphosate. EFSA Journal 15(9):4979.
EFSA (2023) Peer review of the pesticide risk assessment of the active substance glyphosate. EFSA Journal 21(7):8164.
Hegyi J, Schwartz RA, Hegyi V (2004) Pellagra: dermatitis, dementia, and diarrhea. Int J Dermatol 43:1–5.
Schwedt I et al. (2023) The low mutational flexibility of the EPSP synthase in Bacillus subtilis… Environ Microbiol 25:3604–3622.
Wicke D et al. (2019) Identification of the first glyphosate transporter by genomic adaptation. Environ Microbiol 21:1287–1305.
Hong HA et al. (2009) Bacillus subtilis isolated from the human gastrointestinal tract. Res Microbiol 160:134–143.
Leino L et al. (2021) Classification of the glyphosate target enzyme (EPSPS)… J Hazard Mater 408:124556.
Puigbò P et al. (2022) Does glyphosate affect the human microbiota? Life 12(5):707.
Nielsen LN et al. (2018) Glyphosate has limited short-term effects on commensal bacterial community composition in the gut environment… Environ Pollut 233:364–376.
Mesnage R et al. (2021) Use of shotgun metagenomics and metabolomics to evaluate the impact of glyphosate or Roundup MON 52276 on the gut microbiota… Environ Health Perspect 129(1):017005.
WHO/FAO/UNU (2007) Protein and amino acid requirements in human nutrition. WHO Technical Report Series 935.
Agus A, Planchais J, Sokol H (2018) Gut microbiota regulation of tryptophan metabolism in health and disease. Cell Host Microbe 23:716–724.
Rodionov DA et al. (2003) Comparative genomics of the vitamin B12 metabolism and regulation in prokaryotes. J Biol Chem 278:41148–41159.
Green R et al. (2017) Vitamin B12 deficiency. Nat Rev Dis Primers 3:17040.
Maeda H, Dudareva N (2012) The shikimate pathway and aromatic amino acid biosynthesis in plants. Annu Rev Plant Biol 63:73–105.
Herrmann KM, Weaver LM (1999) The shikimate pathway. Annu Rev Plant Physiol Plant Mol Biol 50:473–503.
Citterio CE, Targovnik HM, Arvan P (2019) The role of thyroglobulin in thyroid hormonogenesis. Nat Rev Endocrinol 15:323–338.
PubChem: Glyphosate, CID 3496. https://pubchem.ncbi.nlm.nih.gov/compound/3496
Antoniou MN et al. (2019) Glyphosate does not substitute for glycine in proteins of actively dividing mammalian cells. BMC Res Notes 12:494. doi:10.1186/s13104-019-4534-3
Samsel A, Seneff S (2013) Glyphosate’s suppression of cytochrome P450 enzymes and amino acid biosynthesis by the gut microbiome. Entropy 15:1416–1463. (A bírált hipotézis forrása.)
Samsel A, Seneff S (2016) Glyphosate pathways to modern diseases V: Amino acid analogue of glycine in diverse proteins. J Biol Phys Chem 16:9–46. (Hipotézis, kísérleti adat nélkül.)
Syed K, Mashele SS (2014) Comprehensive comparative analysis of cytochrome P450 signature motifs EXXR and CXG… PLoS ONE 9(4):e95616. PMC3990721
Richard S et al. (2005) Differential effects of glyphosate and Roundup on human placental cells and aromatase. Environ Health Perspect 113:716–720.
EFSA (2017) Peer review of the potential endocrine disrupting properties of glyphosate. EFSA Journal 15(9):4979.
US EPA (2015) EDSP Weight of Evidence Conclusions on the Tier 1 Screening Assays: Glyphosate.
EFSA (2023) Peer review of the pesticide risk assessment of the active substance glyphosate. EFSA Journal 21(7):8164.
Bogan KL, Brenner C (2008) Nicotinic acid, nicotinamide, and nicotinamide riboside… NAD⁺ precursor vitamins. Annu Rev Nutr 28:115–130.
Covarrubias AJ et al. (2021) NAD⁺ metabolism and its roles in cellular processes during ageing. Nat Rev Mol Cell Biol 22:119–141.
Badawy AA-B (2017) Kynurenine pathway of tryptophan metabolism: regulatory and functional aspects. Int J Tryptophan Res 10:1178646917691938.
Hegyi J, Schwartz RA, Hegyi V (2004) Pellagra: dermatitis, dementia, and diarrhea. Int J Dermatol 43:1–5.
Brewster DW, Warren J, Hopkins WE (1991) Metabolism of glyphosate in Sprague-Dawley rats: tissue distribution… Fundam Appl Toxicol 17:43–51.
Anadón A et al. (2009) Toxicokinetics of glyphosate and its metabolite AMPA in rats. Toxicol Lett 190:91–95.
EFSA (2019) Review of the existing maximum residue levels for glyphosate. EFSA Journal 17(10):5862.
Leino L et al. (2021) Classification of the glyphosate target enzyme (EPSPS) for assessing sensitivity of organisms to the herbicide. J Hazard Mater 408:124556.
Puigbò P et al. (2022) Does glyphosate affect the human microbiota? Life 12(5):707.
Nielsen LN et al. (2018) Glyphosate has limited short-term effects on commensal bacterial community composition in the gut environment due to sufficient aromatic amino acid levels. Environ Pollut 233:364–376.
Mesnage R et al. (2021) Use of shotgun metagenomics and metabolomics to evaluate the impact of glyphosate or Roundup MON 52276 on the gut microbiota and serum metabolome of Sprague-Dawley rats. Environ Health Perspect 129(1):017005.
Schwedt I et al. (2023) The low mutational flexibility of the EPSP synthase in Bacillus subtilis is due to a higher demand for shikimate pathway intermediates. Environ Microbiol 25(12):3604–3622. doi:10.1111/1462-2920.16518
Wicke D et al. (2019) Identification of the first glyphosate transporter by genomic adaptation. Environ Microbiol 21(4):1287–1305.
Hong HA et al. (2009) Bacillus subtilis isolated from the human gastrointestinal tract. Res Microbiol 160:134–143.
WHO/FAO/UNU (2007) Protein and amino acid requirements in human nutrition. WHO Technical Report Series 935.
Agus A, Planchais J, Sokol H (2018) Gut microbiota regulation of tryptophan metabolism in health and disease. Cell Host Microbe 23:716–724.
Rodionov DA et al. (2003) Comparative genomics of the vitamin B12 metabolism and regulation in prokaryotes. J Biol Chem 278:41148–41159.
Magnúsdóttir S et al. (2015) Systematic genome assessment of B-vitamin biosynthesis suggests co-operation among gut microbes. Front Genet 6:148.
Citterio CE, Targovnik HM, Arvan P (2019) The role of thyroglobulin in thyroid hormonogenesis. Nat Rev Endocrinol 15:323–338.
Maeda H, Dudareva N (2012) The shikimate pathway and aromatic amino acid biosynthesis in plants. Annu Rev Plant Biol 63:73–105.
Herrmann KM, Weaver LM (1999) The shikimate pathway. Annu Rev Plant Physiol Plant Mol Biol 50:473–503.
Rich PR (2003) The molecular machinery of Keilin’s respiratory chain. Biochem Soc Trans 31:1095–1105.